
Einleitung: Das Wasser im menschlichen Körper und seine Verteilung
Der menschliche Körper ist ein faszinierendes, hochkomplexes System, dessen Masse je nach Alter, Geschlecht und Fitnesszustand zu etwa 50 bis 60 Prozent aus Wasser besteht. Dieses Wasser ist keineswegs gleichmäßig im Körper verteilt, sondern befindet sich in präzise regulierten Kompartimenten. Man unterscheidet grob zwischen dem intrazellulären Raum (innerhalb der Zellen, macht etwa zwei Drittel des Körperwassers aus) und dem extrazellulären Raum (außerhalb der Zellen, circa ein Drittel).
Der extrazelluläre Raum unterteilt sich wiederum in den Intravasalraum (das Wasser in den Blutgefäßen) und das Interstitium – den Raum zwischen den Zellen, der von der sogenannten extrazellulären Matrix (EZM) durchzogen wird.
Die Frage, was genau Wasser im Gewebe bindet, führt uns tief in die Biochemie, Biophysik und Physiologie des menschlichen Organismus. Es ist kein passives „Vollgesaugtsein“, sondern ein hochdynamischer, physikalisch-chemischer Prozess, der von spezialisierten Makromolekülen, osmotischen Gradienten und strukturellen Proteinen gesteuert wird. In diesem ersten Teil unseres Expertenartikels beleuchten wir die molekularen Akteure, die als die ultimativen Wassermagneten unseres Körpers fungieren.
Die Extrazelluläre Matrix (EZM) als molekulares Wassernetzwerk
Das Interstitium ist keineswegs ein leerer Raum oder eine einfache wässrige Brühe. Vielmehr handelt es sich um ein komplexes, gelartiges Netzwerk aus Makromolekülen, das als Extrazelluläre Matrix (EZM) bezeichnet wird. Die EZM besteht im Wesentlichen aus drei Hauptkomponenten:
Fibrillären Proteinen (wie Kollagen und Elastin, die Zugfestigkeit und Elastizität verleihen),
Adhäsionsproteinen (wie Fibronectin und Laminin) und
Grundsubstanz, die sich aus hochgradig hydratisierten Proteoglykanen und Glykosaminoglykane zusammensetzt.
Es ist vor allem diese Grundsubstanz, die als der primäre Wasserspeicher des Gewebes dient. Die Moleküle in dieser Matrix besitzen chemische Eigenschaften, die sie extrem hygroskopisch (wasseranziehend) machen. Sie bilden ein dreidimensionales Gel, das wie ein molekularer Schwamm funktioniert: Es verhindert, dass das Wasser frei im Gewebe verrinnt, und sorgt gleichzeitig dafür, dass Nährstoffe, Signalmoleküle und Abfallprodukte frei zwischen Blutkapillaren und Zellen diffundieren können.
Glykosaminoglykane (GAGs) und Proteoglykane: Die wahren Wassermagneten
Um zu verstehen, warum Gewebe Wasser so effektiv binden kann, muss man die molekulare Struktur der Glykosaminoglykane (GAGs) und der an sie gekoppelten Proteoglykane betrachten. GAGs sind lange, unverzweigte Polysaccharidketten (Mehrfachzucker), die aus sich wiederholenden Disaccharideinheiten bestehen.
Chemische Eigenschaften von GAGs
Negative Ladungen: GAGs sind in hohem Maße negativ geladen (polyionisch), da sie zahlreiche Carboxyl- und Sulfatgruppen tragen. Diese negativen Ladungen stoßen sich gegenseitig ab, wodurch das Molekül eine gestreckte, raumgreifende Konformation einnimmt. Es entsteht eine Art molekularer Bürsten- oder Federaufbau.
Hydrophilie: Aufgrund ihrer hydrophilen (wasserliebenden) Natur ziehen diese Ketten Wassermoleküle geradezu magisch an. Die Wassermoleküle lagern sich über Wasserstoffbrückenbindungen und elektrostatische Wechselwirkungen an die negativen Ladungen an.
Proteoglykane als Makromoleküle
Wenn kovalent an ein Protein-Backbone eine Vielzahl solcher GAG-Ketten gebunden ist, spricht man von Proteoglykanen. Ein klassisches und extrem wirksames Beispiel hierfür ist Aggrecan, welches vor allem im Knorpelgewebe vorkommt. Aggrecan-Moleküle lagern sich wiederum an eine zentrale Hyaluronsäure-Kette an und bilden gigantische Aggregate. Diese Aggregate können enorme Mengen Wasser binden – bis zum Hundertfachen ihres eigenen Trockengewichts.
Wenn Druck auf das Gewebe ausgeübt wird (beispielsweise beim Gehen auf den Gelenkknorpel), wird das Wasser vorübergehend aus diesem Proteoglykan-Netzwerk herausgepresst. Sobald der Druck nachlässt, strömt das Wasser aufgrund der enormen osmotischen und elektrostatischen Rückstellkräfte sofort wieder in das Netzwerk zurück. Dieser Mechanismus ist der Grund, warum Knorpel als genialer Stoßdämpfer fungieren kann.
Hyaluronsäure: Der Superstar der Hydratation
Unter den Glykosaminoglykane nimmt die Hyaluronsäure (auch Hyaluronan genannt) eine absolute Sonderstellung ein. Im Gegensatz zu den meisten anderen GAGs ist sie nicht sulfatiert und wird nicht im Endoplasmatischen Retikulum von Zellen zusammengesetzt, sondern direkt an der Zellmembran synthetisiert.
Größe und Struktur: Hyaluronsäure ist ein Riesenmolekül (ein Makromolekül mit extrem hoher molarer Masse), das Kettenlängen von mehreren Millionen Dalton erreichen kann.
Wasserbindungskapazität: Ein einzelnes Hyaluronsäure-Molekül kann ein Vielfaches seines Eigengewichts an Wasser binden. In Lösung nimmt es ein riesiges hydrodynamisches Volumen ein.
Vorkommen: Hyaluronsäure ist nicht nur ein wesentlicher Bestandteil der Gelenkflüssigkeit (Synovia) und des Glaskörpers des Auges, sondern kommt auch in enormen Mengen in der Dermis (der Lederhaut) der Haut vor. Hier sorgt sie dafür, dass die Haut prall, elastisch und optimal mit Feuchtigkeit versorgt bleibt.
Die Fähigkeit der Hyaluronsäure, Wasser in einem dreidimensionalen Netzwerk zu fixieren, macht sie zu einem unverzichtbaren Baustein im gesamten menschlichen Bindegewebe.
Der osmotische Druck und das Starling-Gleichgewicht
Neben den makromolekularen Strukturen der Extrazellulären Matrix spielen auch physikalische Kräfte eine entscheidende Rolle bei der Wasserbindung im Gewebe. Hier kommt das Zusammenspiel aus hydrostatischem Druck und onkotischem Druck (dem kolloidosmotischen Druck) ins Spiel, das im sogenannten Starling-Gleichgewicht beschrieben wird.
Kapillardruck (hydrostatischer Druck): Das Herz pumpt Blut durch die Kapillaren. Dieser Druck drückt Flüssigkeit aus den Blutgefäßen heraus in das umliegende Interstitium.
Plasmaproteine (onkotischer Druck): Proteine im Blutplasma – insbesondere Albumin – können die Kapillarwand in der Regel nicht frei passieren. Sie erzeugen einen osmotischen Sog (den kolloidosmotischen Druck), der Wasser zurück in die Blutgefäße zieht.
Interstitieller onkotischer Druck: Auch im Gewebe befinden sich gelöste Proteine und GAGs, die einen eigenen osmotischen Druck erzeugen, welcher Wasser im Interstitium hält.
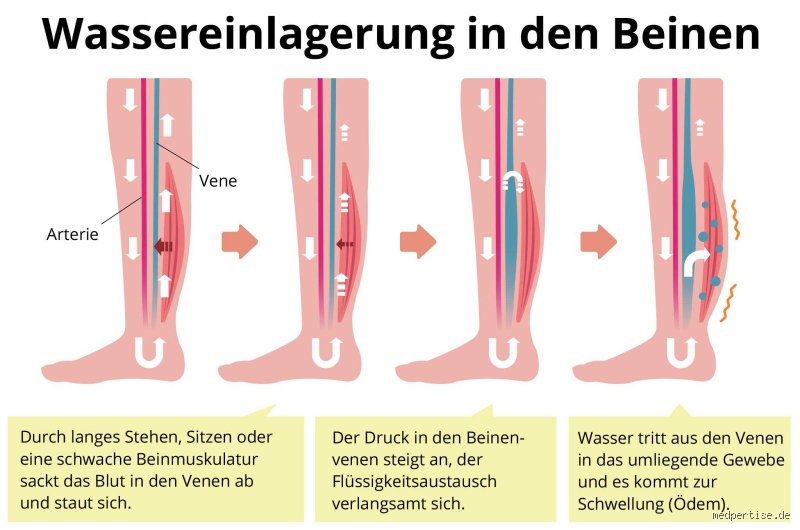
Das feine Gleichgewicht dieser Drücke bestimmt, wie viel Wasser im Gewebe verbleibt und wie viel abtransportiert wird. Gerät dieses System aus der Balance – etwa durch Entzündungen, eine Mangelernährung (Hungerödem durch Albuminmangel) oder eine gestörte Lymphdrainage –, kann es zu pathologischen Wasseransammlungen, sogenannten Ödemen, kommen.
... nach den grundlegenden physikalischer und osmotischen Mechanismen, die den Flüssigkeitstransfer zwischen Kapillaren und Interstitium steuern, rückt nun die molekulare Ebene in den Fokus. Hier entscheidet sich, wie das Wasser im Gewebe tatsächlich gebunden, zurückgehalten oder mobilisiert wird.
3. Die molekulare Architektur der Gewebshydratation: Extrazelluläre Matrix und Glykosaminoglykane
Während freies Wasser im Interstitium (das sogenannte freie Interstitium) relativ ungehindert fließen kann, ist der Großteil der Gewebsflüssigkeit an makromolekulare Strukturen gebunden. Diese bilden die sogenannte Extrazelluläre Matrix (EZM), ein komplexes Netzwerk aus Proteinen und Kohlenhydraten, das jede Zelle umgibt.
3.1 Glykosaminoglykane (GAGs) und Hyaluronsäure
Die wichtigsten Akteure bei der molekularen Wasserbindung sind die Glykosaminoglykane (GAGs) – unverzweigte Polysaccharidketten, die aus sich wiederholenden Disaccharideinheiten bestehen. Zu den bekanntesten GAGs gehören:
Hyaluronsäure (Hyaluronan)
Chondroitinsulfat
Dermatansulfat
Heparansulfat
Besonders Hyaluronsäure nimmt in diesem Gefüge eine Sonderstellung ein. Sie ist ein riesiges Molekül, das keine kovalente Bindung an Proteine eingeht, sondern frei in der EZM vorliegt. GAGs zeichnen sich durch eine extrem hohe Dichte an negativen Ladungen (Carboxyl- und Sulfatgruppen) aus.
3.2 Der physikochemische Mechanismus: Hydrophilie und Ladungsabstoßung
Aufgrund ihrer starken negativen Ladung ziehen GAGs positiv geladene Ionen (Kationen wie Natrium, ) in großer Zahl an. Dies erzeugt ein lokales osmotisches Gefälle (Donnan-Effekt).
Hydrathülle: Die positiv geladenen Ionen und die stark polaren Gruppen der GAGs ziehen Wassermoleküle an und binden sie über Wasserstoffbrückenbindungen.
Raumbedarf (Schweizer-Käse-Prinzip / Bürstenstruktur): Die stark negativ geladenen Seitenketten stoßen sich gegenseitig ab. Dadurch nimmt das Molekül eine gestreckte, gelartige Struktur ein, die viel Raum beansprucht. In diesen makroskopischen „Schwamm“ kann ein Vielfaches des Eigengewichts an Wasser eingeschlossen werden.
Elastizität: Wenn Druck auf das Gewebe ausgeübt wird (etwa beim Gehen auf Knorpelgewebe), wird das Wasser vorübergehend herausgepresst. Fällt der Druck weg, strömt das Wasser aufgrund der starken molekularen Affinität sofort wieder zurück – ein genialer biologischer Stoßdämpfer.
4. Elektrolyt-Haushalt: Die nicht-osmotische Natriumspeicherung im Interstitium
Lange Zeit ging die Medizin davon aus, dass Natrium im Körper ausschließlich osmotisch aktiv ist – sprich: Jedes Gramm Natrium bindet eine exakt vorhersagbare Menge Wasser, um die Osmolarität der Körperflüssigkeiten konstant zu halten. Neuere fisiologische Forschungen (u.a. durch die Arbeitsgruppe um Prof. Jens Titze) haben dieses Dogma jedoch grundlegend erweitert.
4.1 Natriumspeicher Haut und Muskulatur
Es hat sich gezeigt, dass die Haut und die Skelettmuskulatur als riesige nicht-osmotische Natriumspeicher dienen können.
Natrium wird hier in gebundener Form innerhalb der Glykosaminoglykane der EZM deponiert, ohne dass proportional dazu große Mengen Wasser frei im Gewebe osmotisch gebunden werden müssen.
Das bedeutet: Das Gewebe kann lokal hohe Natriumkonzentrationen aufbauen, die von Immunzellen (Makrophagen) und der Matrix reguliert werden, was als evolutionärer Puffer gegen osmotische Schwankungen im Blutkreislauf dient.
4.2 Der Einfluss von Entzündungen auf die Natrium- und Wasserbindung
Bei entzündlichen Prozessen verändert sich die Struktur der GAGs. Enzyme (wie Hyaluronidasen) spalten große Hyaluronsäuremoleküle in kleinere Bruchstücke auf.
Diese niedermolekulare Hyaluronsäure verhält sich hydrodynamisch völlig anders: Sie bindet deutlich mehr Wasser und rekrutiert gleichzeitig pro-inflammatorische Immunzellen.
Das Ergebnis ist das klassische Ödem bei einer Entzündung: Das Gewebe schwillt an, weil die Matrix ihre physikalische Struktur verändert und gezielt Flüssigkeit festhält, um Immunzellen den Transport zu erleichtern.
5. Hormonelle und systemische Steuerung der Gewebshydratation
Der Wassergehalt im Gewebe wird nicht nur lokal durch den kolloidosmotischen Druck und die Matrix bestimmt, sondern steht unter strenger systemischer Kontrolle durch das endokrine System.
5.1 Das Renin-Angiotensin-Aldosteron-System (RAAA)
Sinkt der Blutdruck oder das Blutvolumen, schüttet die Niere Renin aus. Dies triggert eine Kaskade, die zur Bildung von Aldosteron führt.
Aldosteron bewirkt in den Nieren eine verstärkte Rückresorption von Natrium und Wasserausscheidung.
Gleichzeitig erhöht Aldosteron aber auch die Natriumspeicherkapazität im Interstitium (insbesondere in Haut und Muskeln), wodurch indirekt die lokale Gewebshydratation beeinflusst wird.
5.2 Antidiuretisches Hormon (ADH / Vasopressin)
ADH steuert primär die Wasserrückgewinnung in den Nierensammelrohren. Bei Stress, Schmerz oder hohem osmotischen Druck im Blut wird vermehrt ADH ausgeschüttet. Dies führt dazu, dass weniger Wasser über den Urin verloren geht, wodurch das gesamte Extrazellulärvolumen – und somit auch der Gewebswassergehalt – steigt.
5.3 Cortisol und Stresshormone
Glukokortikoide haben einen direkten Einfluss auf den Proteinstoffwechsel der Haut und die Synthese von Glykosaminoglykane. Chronischer Stress und ein erhöhter Cortisolspiegel können die Barrierefunktion und die Matrixstruktur des Gewebes verändern, was oft zu charakteristischen Flüssigkeitsverschiebungen im Unterhautgewebe führt.
6. Pathophysiologie: Wenn das Gleichgewicht kippt
Versagen die Regulationsmechanismen, kommt es zu pathologischen Zuständen der Gewebshydratation. Man unterscheidet im Wesentlichen zwei Extreme:
7. Fazit
Die Frage „Was bindet Wasser im Gewebe?“ lässt sich nicht mit einem einzelnen Faktor beantworten. Es handelt sich um ein fein abgestimmtes, mehrschichtiges Zusammenspiel aus:
Physikalischen Druckverhältnissen (Starling-Kräfte zwischen Kapillarlumen und Interstitium),
Biochemischen Makromolekülen (insbesondere Glykosaminoglykane wie Hyaluronsäure in der Extrazellulären Matrix, die als molekulare Schwämme agieren),
Elektrolyt-Gradienten (der Rolle von Natrium als osmotischem und nicht-osmotischem Regulator) sowie
Systemischen Hormonen (wie Aldosteron und ADH), die den Wasserhaushalt des gesamten Organismus steuern.
Das Gewebe ist demnach kein starrer Speicher, sondern ein hochdynamisches, viskoelastisches Medium, das sich kontinuierlich an physiologische Erfordernisse, metabolische Zustände und pathologische Reize anpasst. Die Erforschung dieser Mechanismen bleibt ein Schlüsselgebiet der modernen Physiologie und Pathologie, insbesondere im Hinblick auf chronische Entzündungen, Wundheilung und den Alterungsprozess des menschlichen Körpers.
💡 Wichtige Punkte
- Was bindet Wasser im Gewebe? - Eiweiße haben die Eigenschaft, Flüssigkeit zu ziehen und zu binden: Dort wo viel Eiweiß ist, wird auch viel Flüssigkeit hingezogen und gebunden.
- Was bindet Wasser im Darm? - Lösliche Ballaststoffe wirken wie ein Gel. Sie binden viel Wasser im Darm, quellen auf und machen den Stuhl geschmeidig.
- Was bindet Wasser? - Sowohl Salz, als auch Zucker binden Wasser und fördern die Entstehung von Ödemen.
- Welcher Stoff bindet Wasser? - Beispiele für stark hygroskopische Substanzen Kochsalz nimmt bei mehr als 75 % relativer Luftfeuchte soviel Wasser auf, dass es zähflüssig wird.
- Was bindet Giftstoffe im Darm? - Activomin® besitzt die Fähigkeit, Schadstoffe und Toxine im menschlichen Darm fest an sich zu binden.