Les fondements biologiques de la transmission génétique
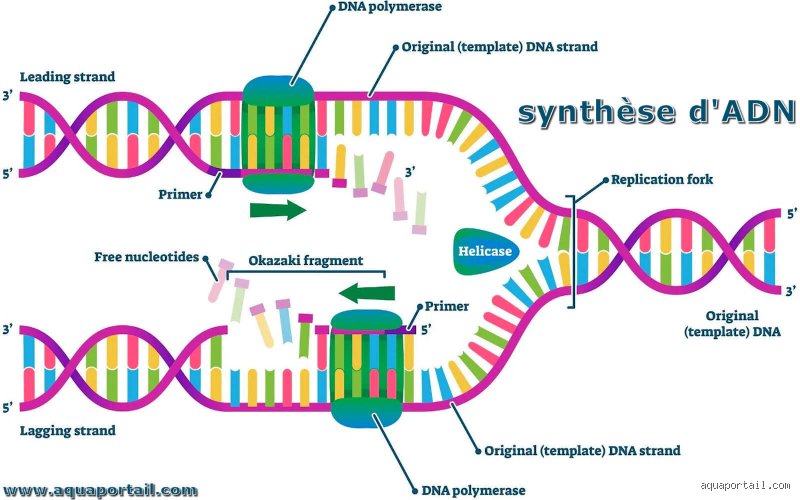
La transmission de l'ADN s'ancre dans la structure même de l'hérédité cellulaire. L'ADN, molécule en double hélice composée de nucléotides – adénine, thymine, cytosine, guanine –, porte l'information génétique sous forme de gènes. Chez les eucaryotes, ces gènes s'organisent en chromosomes linéaires, au nombre de 46 chez l'humain, répartis en 23 paires. La réplication semi-conservative de l'ADN, découverte par Meselson et Stahl en 1958, duplique fidèlement cette information avant toute division cellulaire, avec un taux d'erreur inférieur à 10-9 par base par génération.
Ce mécanisme assure la continuité des traits héréditaires, des protéines enzymatiques aux caractères morphologiques. Sans cette fidélité, l'espèce humaine verrait son génome dériver en quelques générations. Les allèles, variantes d'un gène à un locus donné, déterminent la diversité phénotypique : un allèle dominant masque souvent le récessif, comme dans le modèle mendélien.
La génétique mendélienne pose les bases : loi de ségrégation (1:2:1 chez les hétérozygotes) et loi d'assortiment indépendant pour les gènes non liés. Pourtant, jusqu'à 30 % des gènes humains subissent un linkage, modifiant ces ratios.
La méiose : moteur essentiel de la transmission de l'ADN
La méiose transforme les cellules germinales diploïdes en gamètes haploïdes, halvant le nombre de chromosomes de 46 à 23. Ce processus en deux divisions successives – méiose I et II – intègre le crossing-over, échange de segments homologues durant la prophase I, générant jusqu'à 4 × 10⁸ combinaisons uniques chez l'humain.
Durant la méiose I, les paires homologues s'alignent à la plaque métaphasique avant de s'éloigner, suivant la loi de Mendel. La méiose II mime la mitose, séparant les chromatides sœurs. Ce brassage assure que chaque spermatozoïde ou ovule porte un assortiment unique d'allèles, rendant improbable la reproduction de deux génomes identiques – à 1 chance sur 10600.
Des anomalies comme la non-disjonction, survenant dans 1 naissance sur 700, mènent à des trisomies comme la 21 (Down), où 47 chromosomes perturbent l'équilibre génétique. Les études sur la drosophile, pionnières chez Sturtevant en 1913, ont cartographié ces échanges à 50 cartomorgans en moyenne.
En somme, la méiose n'est pas qu'une réduction chromosomique ; c'est le creuset de la variabilité évolutive.
Rôle central des chromosomes dans l'hérédité ADN
Les chromosomes encapsulent l'ADN en histones, formant la chromatine. Chez l'humain, le chromosome 1, le plus grand, compte 249 millions de paires de bases, soit 8 % du génome, tandis que le Y n'en abrite que 59 millions. La transmission suit un schéma sexuel : le X maternel et paternel, mais le Y exclusivement paternel, expliquant sa traçabilité sur 100 000 ans en lignées masculines.
Les télomères, séquences TTAGGG répétées 5 000 à 15 000 fois, protègent les extrémités ; leur raccourcissement de 50-200 bases par division limite les réplications somatiques à environ 50 cycles (limite de Hayflick). Dans les gamètes, la télomérase restaure ces séquences, perpétuant l'ADN intact.
Les centromères orchestrent la migration chromosomique, avec des protéines comme la kinétochore liant les microtubules. Une défaillance ici élève le risque de micronoyaux, précurseurs de cancers.
La fécondation : union décisive des génomes parentaux
La transmission de l'ADN culmine à la fécondation, où un spermatozoïde fusionne avec un ovocyte. Le mâle produit 108 à 109 gamètes par éjaculat, sélectionnés par mobilité (seuls 1 sur 1 000 atteignent l'ovule). L'acrosome libère des enzymes lysant la zona pellucida en 30 minutes.
Post-fusion, les pronucléi mâle et femelle – chacun 23 chromosomes – s'unissent en un zygote diploïde. La pronucléase bloque la polyspermie via une dépolarisation membranaire et la cortical reaction, élevant le pH cytoplasmique de 0,5 unité.
Ce zygote entame alors la segmentation, réactivant la transcription génétique après 4-8 divisions. Chez l'humain, la blastocystation survient en 5 jours, avec 70 % d'embryons viables in vitro selon les cliniques de PMA.
La contribution paternelle-maternelle n'est pas égale : l'empreinte génomique silence 100 gènes parentaux spécifiques, influençant la croissance fœtale jusqu'à 20 % via IGF2.
Différences entre mitose et méiose dans la transmission génétique
La mitose propage l'ADN identique dans les cellules somatiques : une cellule mère donne deux filles diploïdes, avec 99,999 % de fidélité. Idéale pour la croissance, elle ignore la recombinaison.
La méiose, en revanche, halve et mélange : crossing-over (1-3 par paire) et indépendance (223 combinaisons) génèrent diversité. La mitose domine en durée – 1 heure vs 24-48 heures pour méiose – mais la seconde excelle en variabilité, essentielle à l'évolution darwinienne.
Comparons : un clone mitotique reste 100 % identique ; un hybride méiotique diverge de 0,1 % par génération via mutations ponctuelles (10-8/site). La mitose suffit pour l'asexualité chez les bactéries ; la méiose règne chez les vertébrés.
Facteurs modulant la fidélité de la transmission de l'ADN
Les mutations altèrent la hérédité génétique : substitutions (60 %), insertions/délétions (25 %), translocations (15 %). Le système de réparation mismatch corrige 99 % des erreurs post-réplication, mais 50-100 mutations neutres s'accumulent par gamète humain.
L'âge parental pèse : risque de trisomie 21 grimpe de 1/1 500 à 35 ans maternels à 1/100 à 40 ans, via usure ovocytaire. Le tabac double les transversions G→T ; l'alcool induit breaks double brin à 20 % supérieurs.
L'épigénétique module sans changer la séquence : méthylation CpG silence 70 % des promoteurs X inactivé. Ces marques persistent partiellement à la transmission, contrairement au reset méiotique quasi-total.
Et si on parle d'épigénétique transgénérationnelle ? Des études sur souris montrent une héritabilité sur 3 générations pour famine induite – fascinant, mais chez l'humain, les preuves divergent, avec un consensus flou autour de 5-10 % d'effet.
Erreurs courantes et pièges dans la compréhension de l'hérédité ADN
Mal comprendre le crossing-over mène à surestimer l'homogénéité fraternelle : des jumeaux dizygotes partagent 50 % d'allèles, mais le brassage rend leurs génomes uniques à 99,9 %. Évitez le mythe du "gène unique pour un trait" : le polygenisme régit 80 % des phénotypes complexes comme la taille (15 loci majeurs).
Les tests ADN grand public trompent : ils capturent 0,02 % du génome, ignorant 98 % d'introns non codants. Priorisez séquençage complet pour fiabilité, coûtant 600 euros vs 50 pour puces SNP.
Une erreur persistante : croire l'ADN mitochondrial 100 % maternel. Oui, mais avec recombinaison rare et mutations à 10 fois le taux nucléaire, traçant les lignées Ève mitochondriale à 150 000 ans. Heureusement, sans mitosomes, on n'hériterait que du père – un peu monotone génétiquement.
Questions fréquentes sur comment l'ADN est transmis
Combien de chromosomes transmet-on à chaque génération ?
Exactement 23 haploïdes par parent, formant 46 diploïdes. Chez l'humain, cela concerne 22 autosomes + sexes. Les plantes comme le blé en transmettent 21 par gamète (hexaploïde). Une variation ? Les polyploïdes artificiels doublent cela pour vigueur hybride.
Pourquoi la transmission de l'ADN varie-t-elle selon le sexe ?
Le mâle transmet X ou Y (50/50), la femelle toujours X. L'ADNmt est maternel à 100 %, avec 16 569 bases codant 37 gènes essentiels à l'ATP. Chez les invertébrés, biparentalité mitochondriale existe, mais rare chez mammifères (1 cas sur 106).
Quelle influence ont les mutations sur la transmission génétique ?
1-2 % des naissances portent une nouvelle mutation délétereuse, sélectionnée négativement. Le drift génétique fixe 70 % des neutres en populations isolées, comme chez les Amish (fréquence Tay-Sachs à 1/3 000 vs 1/300 000 global).
Conclusion : la transmission de l'ADN décryptée
La transmission de l'ADN orchestre méiose, fécondation et réparation pour perpétuer la vie avec variabilité contrôlée. Des 3 milliards de paires de bases humaines, 99,9 % se copient fidèlement, tandis que crossing-over et mutations forgent l'évolution. Comprendre ces mécanismes éclaire diagnostics prénataux (taux de détection 95 % pour aneuploïdies) et thérapies géniques comme CRISPR, éditant 80 % des cibles in vitro. Pourtant, l'épigénétique et l'environnement rappellent que l'hérédité n'est pas fataliste : elle s'adapte, entre 40 % génétique et 60 % acquis pour l'intelligence. Maîtriser cela démystifie l'hérédité, sans illusions.